

FUNCAT-PLA与Puro-PLA实现新生蛋白原位追踪可视化
2026-11-09 来源:本站 点击次数:25在细胞中,蛋白质的合成并非一成不变:外界刺激、发育信号或疾病状态都会动态调控特定蛋白的“出生时间”与“出生地点”。传统方法——如放射性氨基酸脉冲标记或质谱分析——能回答“合成了多少”,却难以回答“在哪里合成”以及“新生蛋白随后去了哪里”。
2015年发表在Nature Methods 上的《Direct visualization of newly synthesized target proteins in situ》,开发了一种将代谢标记与邻位连接技术(PLA) 相结合的策略,成功实现了对特定内源性新生蛋白的原位可视化,分辨率达到亚细胞级别。主要包括两种平行方案:FUNCAT‑PLA(基于非天然氨基酸AHA)和Puro‑PLA(基于嘌呤霉素)。
一,工作原理
FUNCAT:用AHA(叠氮高丙氨酸)替代甲硫氨酸,掺入新生蛋白;再通过点击化学为其接上生物素。
Puro:用低浓度嘌呤霉素处理细胞,嘌呤霉素作为tRNA类似物会终止翻译并留在新生肽链C端。
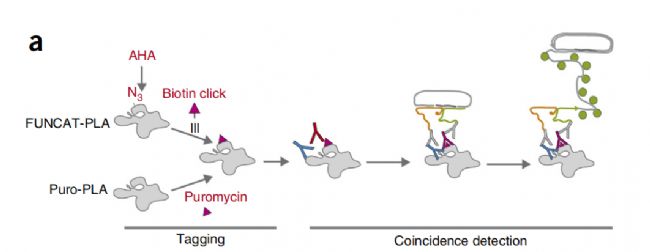
图1、新生蛋白标记工作原理
特异性识别目标蛋白:同时使用目标蛋白(POI)的特异性抗体。
PLA原位检测:只有当“新生标签抗体”与“POI抗体”在空间上足够接近(<40 nm),PLA探针才会连接成环并启动滚环扩增,最终产生明亮的荧光点。反之则无信号,背景极低。
二,方法验证:信号依赖性与特异性
FUNCAT-PLA(Fig. 1b):左图显示 AHA 标记 2 小时后,新生 Camk2a 信号在神经元胞体和树突中清晰可见;右图中省略抗 Camk2a 抗体,信号完全消失。
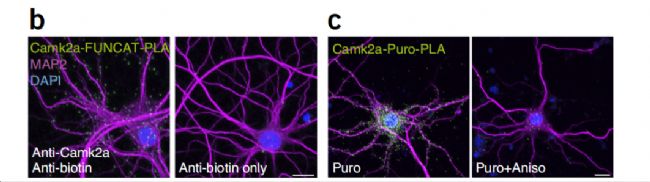
Puro-PLA(Fig. 1c):左图显示嘌呤霉素标记 15 分钟后,新生 Camk2a 信号清晰;右图中用蛋白质合成抑制剂 anisomycin 预处理,信号几乎完全消失。
这些对照实验结果证明,所检测到的 PLA 信号确实来自新合成的目标蛋白。
图1、(b)新合成 Camk2a(2 小时 AHA)在培养海马体神经元(左)和无抗 Camk2a 抗体对照组(右)中 FUNCAT-PLA 信号(绿色)的示例图像。(c) 新合成的 Camk2a(绿色)在未使用(左)或(右)蛋白合成抑制剂阿尼索霉素标记 15 分钟后,Puro-PLA 图像
三、不同蛋白的亚细胞分布
FUNCAT-PLA:AHA 标记 2 小时后,Bassoon(突触前蛋白)的信号不仅出现在胞体,还沿树突分布(可能位于相邻的突触前末梢);而 TGN38(高尔基体/内体蛋白)和 Lamin B(核纤层蛋白)的信号则高度集中于胞体,树突中极少(Fig. 1d)。
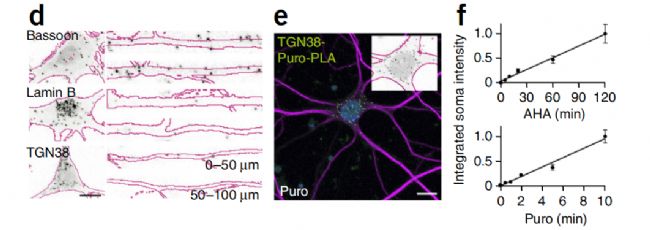
Puro-PLA:嘌呤霉素标记 5 分钟后,TGN38 的信号同样集中在胞体,与 FUNCAT-PLA 结果一致(Fig. 1e)。
结果表明新合成蛋白的分布模式与其 mRNA 的亚细胞定位高度吻合:已知Camk2a mRNA 在树突中丰富,其新生蛋白也分布于树突;而 TGN38 和 Lamin B 的 mRNA 不在树突富集,其新生蛋白仅限于胞体。这证明两种方法均可用于推断蛋白是否在局部合成。
四、时间线性与灵敏度比较
FUNCAT-PLA:AHA 标记时间在 0.5–2 小时内,PLA 信号呈线性增加;Puro-PLA:嘌呤霉素处理时间在 2–15 分钟内,PLA 信号也呈线性增加。在相同的 15 分钟标记条件下,Puro-PLA 的信号强度比 FUNCAT-PLA 高约 10 倍(Fig. 1f)。
FUNCAT-PLA 需要较长的标记时间(小时级),适合 追踪蛋白的长期命运。而Puro-PLA 可在秒至分钟级 完成标记,具有更高的时间分辨率和灵敏度,适合 捕捉快速发生的合成事件。
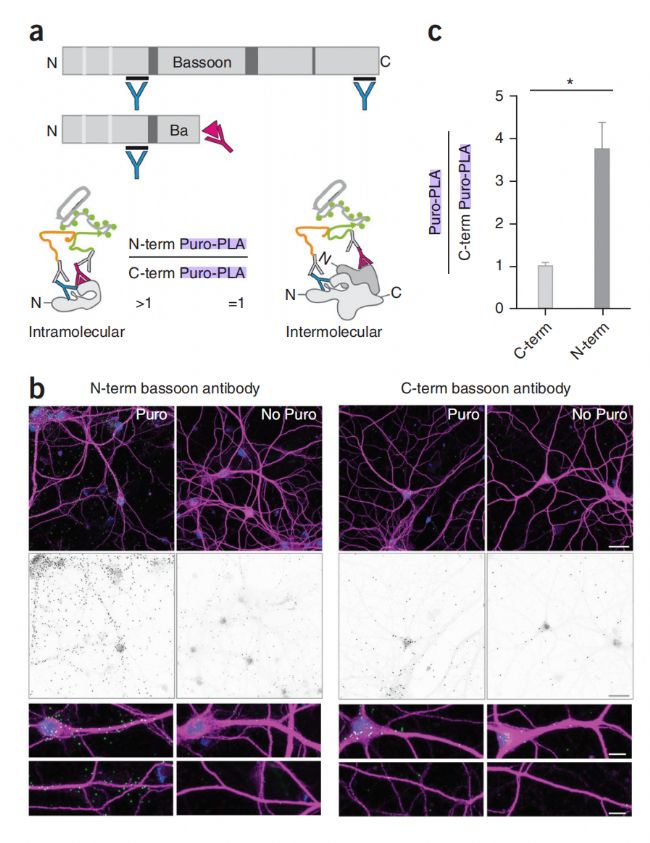
图1、(d) 新合成Bassoon、TGN38 或 LaminB(如所示,2 小时 AHA)在培养海马神经元体质和主树突中(MAP2 轮廓以品红色)中,进行 FUNCAT-PLA(灰度)高倍图像。比例杆 = 10 微米。(e) 新合成的 TGN38 显微照片,进行 5 分钟的嘌呤霉素化。插入:如(d)所示的索玛信号转换。比例杆 = 20 微米。(f) TGN38 FUNCAT-PLA 与 Puro-PLA 信号(体体中 PLA 强度的整合)与 AHA 和普罗霉素对孵育时间依赖性的相关性。
五、证明局部合成:Puro-PLA 的 N/C 端比较(Fig. 2a–c)
嘌呤霉素会终止翻译,因此新生肽链的 N 端先合成,C 端可能尚未完成。若信号来自同一新生肽链,则 N 端抗体的 Puro-PLA 信号应强于 C 端抗体(Fig. 2a)。结果发现仅用 4 分钟 嘌呤霉素标记,即可在树突附近检测到新生 Bassoon 信号(Fig. 2b)。针对 Bassoon 蛋白,N 端抗体的 Puro-PLA 信号显著高于 C 端抗体(Fig. 2c)。
结果证明,Puro-PLA 信号主要来自两个抗体结合到同一条新生肽链上,而非相邻的两个不同蛋白。树突旁在极短标记时间内出现的信号,提供了 Bassoon 存在局部翻译的直接证据。
图2、评估 Puro-PLA 的分子内标记。a) 描绘 N 端和 C 端抗巴松管抗体结合位点的方案(b)代表性荧光图像和特写(上面板,PLA 信号绿色,MAP2 品红和 DAPI 标记核蓝,下板灰度 PLA 信号),显示在用嘌呤霉素标记四分钟或未使用嘌呤霉素后,使用 N 端或 C 端抗 Bassoon 抗体后检测到的 Bassoon 蛋白 Puro-PLA 信号。比例尺=30 um和 10 um。
六、蛋白周转与运输
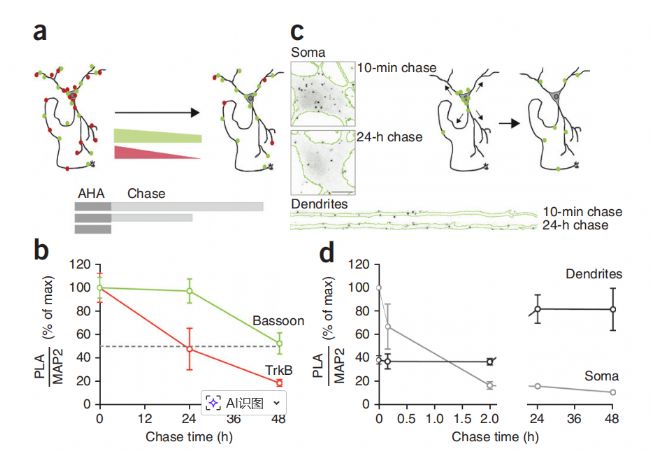
先给细胞2小时AHA标记(脉冲),再换成普通培养基培养不同时间(追赶)进行半衰期测定。结果发现追赶24小时后,TrkB信号剩不到一半。追赶48小时后,Bassoon信号仍剩一半以上(Fig. 3b)。
Bassoon在追赶10分钟时主要在胞体;追赶24小时后,胞体信号减少,树突信号增加(Fig. 3c–d)。
结果表明FUNCAT-PLA 可原位评估蛋白质稳定性,所得半衰期(TrkB ~0.7 天,Bassoon ~2.6 天)与生化方法测定值一致。新合成的 Bassoon 从胞体向外运输,树突中早期出现较高信号提示快速运输或局部合成。
图3、(a) 示意图展示两种半衰期不同、经 FUNCAT‑PLA 标记的假想蛋白。(b) 经 2 小时 AHA 脉冲标记后,Bassoon 蛋白与 TrkB 蛋白的 FUNCAT-PLA 信号强度随追踪时间变化的曲线图。(c) 示意图展示经 FUNCAT‑PLA 标记的假想蛋白群体(绿色)的时空动态;下方为神经元胞体与树突(绿色 MAP2 轮廓)图像,显示 Bassoon 蛋白 FUNCAT‑PLA 信号(灰度图)。细胞经 2 小时 AHA 孵育后,分别进行10 分钟或24 小时追踪。比例尺 = 10 微米;树突长度 = 135 微米。(d) 图 (c) 的定量分析图。数值表示不同追踪时间下,各区域内最大信号密度的百分比。
七、活动依赖性新合成:GluA1 的 FUNCAT-PLA
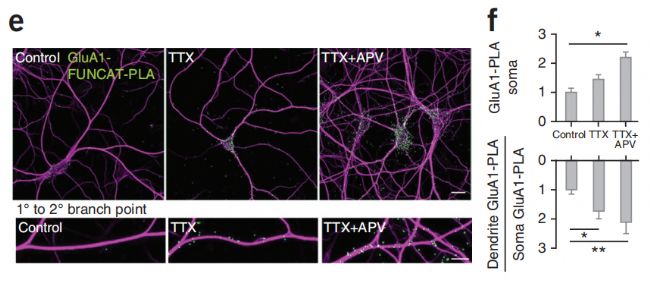
用 TTX 或 TTX+APV 处理神经元诱导稳态可塑性,同时 AHA 标记 3 小时。结果显示,TTX 处理使 GluA1 新合成信号在胞体和树突中均增加,而 TTX+APV 处理增加更显著,且树突中的增幅大于胞体。结果说明稳态可塑性会上调 GluA1 的新合成,且树突中的局部合成可能参与了突触缩放(Fig. 3e–f)。
图3、(e) 显微图像显示:经 3 小时 AHA 标记后,对照组、单独阻断动作电位(TTX)、联合阻断动作电位与微小突触事件的 NMDA 成分(TTX/APV)(诱导稳态可塑性)条件下,GluA1 蛋白的 FUNCAT‑PLA 信号(上方:细胞全景;下方:对应树突局部)。GluA1 FUNCAT‑PLA 信号(绿色),MAP2(品红色)。比例尺:全景图 20 微米,局部放大图 10 微米。(f) 图 (e) 的定量分析。上图:神经元胞体中,GluA1 FUNCAT‑PLA 信号密度相对于对照组归一化;TTX/APV 处理显著上调 GluA1 新生蛋白水平(*P<0.05,P=0.0349)。下图:TTX 或 TTX/APV 处理均显著增强树突内 GluA1 新生蛋白量,且增强幅度高于胞体(*P<0.05,**P<0.01;数据为归一化均值 ± 标准误;3 次独立实验,每组 n=16–25 个细胞;采用单因素方差分析(ANOVA)及 Tukey 多重比较检验)。
八、方法总结
特性 FUNCAT PLA Puro PLA
标记时间 小时级(≥2 h) 分钟级(2–15 min)
是否需要甲硫氨酸饥饿 是 否
信号强度 中等 高(约 10 倍)
能否长时程追赶 能(蛋白完整) 不能(嘌呤霉素截短蛋白,加速降解)
应用 半衰期测定、运输追踪、长时程命运 局部合成位点鉴定、快速合成检测
基于 Nature Methods 论文的实验结果,FUNCAT‑PLA 和 Puro-PLA 第一次让我们能够 在原位、以亚细胞分辨率观察内源性新生蛋白的“出生”与“一生”。两种方法各有优势,互为补充:
需要定位快速翻译事件或局部合成? 选择 Puro‑PLA(时间分辨率高,灵敏度高)。
需要追踪蛋白运输、周转或长时程变化? 选择 FUNCAT‑PLA(可进行脉冲‑追赶实验,不干扰蛋白功能)。
两种方法均已通过严格的对照验证,为神经科学、细胞生物学及疾病机制研究提供了前所未有的工具。
下一期小编将给大家带来两种方法的具体应用!
参考文献:tom Dieck, S. et al., Direct visualization of newly synthesized target proteins in situ. Nature Methods (2015).