

研究背景:染色质重组的 “未解之谜”
DNA 复制后,染色质需快速重建以维持基因表达稳定性,这一过程涉及核小体定位、组蛋白修饰恢复及蛋白质重新结合等复杂事件。此前研究推测转录可能参与该过程,但 RNAPII 如何调控新复制染色质上的蛋白质互作,始终缺乏直接的可视化证据。而 PLA 技术的介入,恰好填补了这一技术空白 —— 它能在单细胞水平上特异性检测蛋白质与 DNA、或蛋白质与蛋白质的邻近相互作用,将瞬时分子事件转化为可量化的荧光信号。
技术融合:从组学到可视化验证
研究团队采用了一种创新的多技术融合策略。他们首先使用iPOND技术特异性地“捕捞”刚复制出来的新生DNA及其结合蛋白,接着通过质谱技术全面分析这些蛋白质组成的变化。
实验设计非常精巧,研究人员比较了在正常转录、仅阻断RNA聚合酶II装载和仅阻断转录延伸三种条件下,新生染色质蛋白组成的差异。
虽然质谱数据提供了大量蛋白质丰度变化的线索,但要从“相关性”推断“因果性”,需要更直接的证据。这时,邻近连接实验(Proximity Ligation Assay, PLA) 成为验证这些假设的关键技术。
PLA 技术的应用
PLA技术的神奇之处在于,它能将蛋白质之间的纳米级空间邻近关系(小于40纳米)转化为显微镜下可见的荧光信号点。在这项研究中,研究人员设计了多组PLA实验,为质谱发现的三个关键问题提供了可视化证据:
1、RNA聚合酶II是否真的结合到新生DNA上?
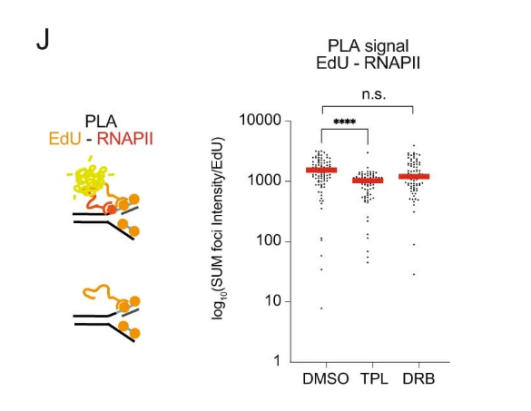
作者通过EdU-PLA实验直接观察RNA聚合酶II与新生DNA的共定位。他们发现,在转录抑制剂(TPL和DRB)处理下,新生染色质上的EdU-RNAPII PLA信号显著减少(对应文中图EV1J)。
这个结果直观证实了转录活性确实调控着RNA聚合酶II与新生DNA的结合。
2、DNA修复因子招募是否依赖转录?
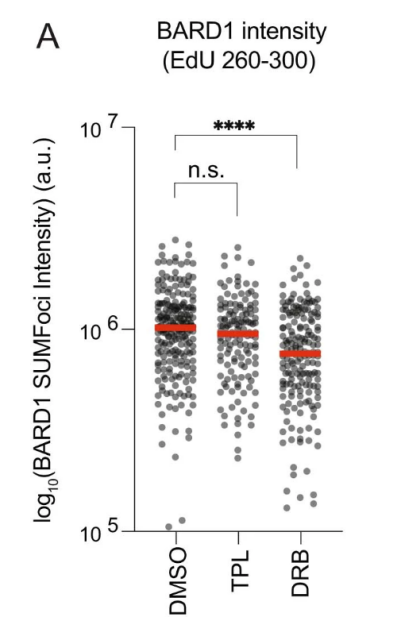
质谱数据显示多个DNA修复途径的蛋白在新生染色质上富集减少。研究人员选择BARD1因子进行PLA验证。EdU-BARD1的PLA实验显示,在DRB处理后,两者在新生染色质上的共定位信号显著降低(图EV5A)。这一结果与 iPOND-MS 数据相互印证,直接支持了转录延伸过程会主动招募DNA修复因子到复制叉后方的假设。
3、转录因子与新生DNA的结合模式
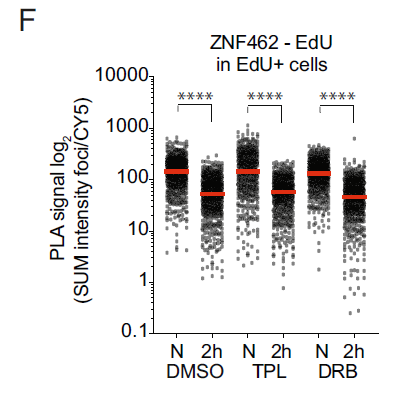
对于转录因子ZNF462,PLA实验提供了更精细的动态信息。EdU-ZNF462 PLA信号显示,该因子会短暂访问新生DNA,然后在2小时内被逐出,有趣的是这个过程不受转录抑制影响(图4F)。
这个结果验证了质谱数据的另一个发现——只有少数转录因子的染色质访问依赖RNA聚合酶II,大多数因子有自己的结合动力学。
PLA 技术的独特优势:为何成为研究 “利器”?
单细胞分辨率:实现单个细胞核内定位特定分子相互作用以及分子互作的单细胞水平定量。
高特异性:精准区分蛋白质与新复制染色质的直接 / 间接结合,避免传统免疫沉淀的非特异性干扰。
高灵敏度:适用于低丰度蛋白(如转录因子、修复蛋白)。
互补验证:与 iPOND-MS 技术形成交叉证据,既通过质谱鉴定结合蛋白,又通过 PLA 可视化互作动态,提供了组学技术难以提供的直接互作证据,让研究结论更具说服力。