

Co-IP条带弱操作失误与生理性弱互作的鉴别方法及5大优化策略
2026-09-17 来源:本站 点击次数:19换完抗体换裂解液,换完细胞系换磁珠,Co-IP曝光后却永远只有IgG重链的“幽灵条带”。别急着否定自己的操作,也别急着质疑文献结论——你遇到的很可能不是实验失误,而是生理性弱互作。
不少人会默认“弱信号=假阳性=无意义”,但事实上,弱互作是细胞调控的重要形式。激酶与底物、E3连接酶与靶蛋白的瞬时催化,信号通路的动态组装,液液相分离的多价结合,都依赖这种弱而可逆的相互作用。强互作多负责维持稳定结构,而弱互作承担了绝大多数动态调控功能。
那么该如何区分操作失误与生理性弱互作?弱互作Co-IP又该如何优化呢?
一、如何区分「操作造成的失败」VS「生物学本身的弱互作」
如果符合以下任意一条,先修技术:
· 阳性对照(比如一对文献公认的强互作蛋白)在你手里也做不出来→操作或试剂体系有问题。
· Input里根本看不到目标蛋白→表达量太低,或抗体WB识别但IP不识别(构象表位被破坏)。
· 裂解后所有蛋白都降解成渣→抑制剂没加对,或裂解条件太剧烈。
· 同一个抗体,别人能做IP你做不了→检查beads批次、抗体用量、孵育时间。
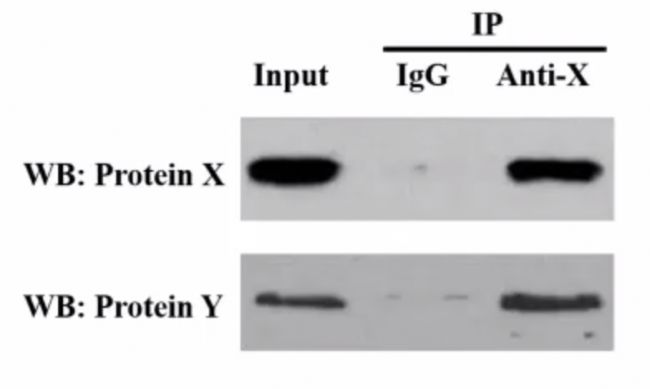
图:正常的Co-IP实验结果图
如果以上都没问题,看看这些指向"弱互作"的信号:
· 文献中这对蛋白的Co-IP图,作者使用了化学交联剂、刺激条件(如药物处理、病毒感染)或过表达系统。
· 这对蛋白属于"功能性接触":激酶-底物、泛素化E3-底物、修饰酶-底物、转录因子-辅因子。
· 互作已知依赖翻译后修饰:比如必须磷酸化后才结合,或必须泛素化后才招募。
· 过表达标签蛋白时能拉下来,内源水平完全拉不下来,说明互作真实存在,但亲和力极低,内源浓度下信号被背景淹没。
· 双向Co-IP均呈现微弱信号:正向(A拉B)和反向(B拉A)都能检测到一致的微弱互作信号,而非单向完全无信号,排除单支抗体的识别问题。
核心判断标准:如果技术体系验证无误,但唯独这一个蛋白对不行,大概率不是你的手有问题,而是这个互作本身就站在Co-IP的能力边界上。
这时候,该做的不是自我怀疑,而是升级策略。
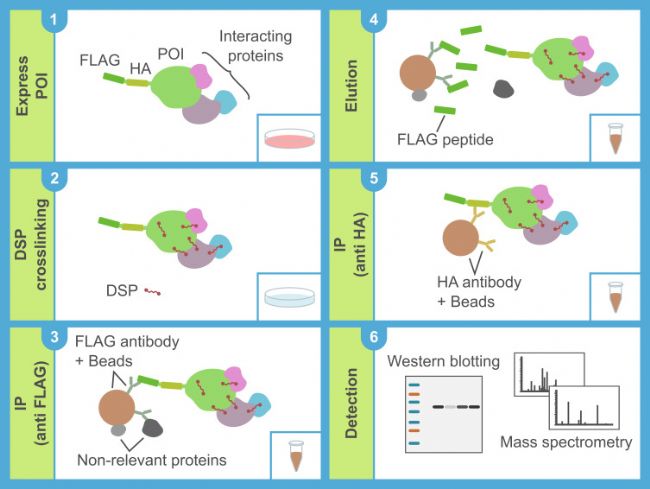
图:DSP交联和IP分离弱蛋白复合物
Bio Protoc. 2022 Aug 5;12(15):e4478.
二、弱互作的Co-IP优化策略:在保证特异性的前提下,守住脆弱复合体
1. 化学交联锁定瞬时互作
对于亲和力低、半衰期短的蛋白互作,化学交联是最有效的增强手段。使用可透过细胞膜的双功能交联剂(如DSP、DTSSP、BS3),在活细胞层面将空间邻近的蛋白共价固定,裂解后复合体仍保持完整。
· 必须在活细胞上交联,裂解后蛋白已自由扩散,再加交联剂没有意义。
· 浓度需要优化,建议设置梯度(0.5mM、1mM、2mM),过高浓度将导致蛋白非特异性聚集,产生假阳性。
· 室温孵育10–30 min,依据细胞类型调整时间,交联结束用20 mM Tris或甘氨酸淬灭,防止过度交联。
· 可逆性处理,DSP含二硫键,后续可用DTT或β-巯基乙醇还原,不会干扰条带位置。
· 必须平行设置"未交联"组,审稿人关注的核心证据是:未交联组信号极弱或缺失,交联组出现特异性条带,由此证明该互作为生理性的瞬态事件,而非非特异性粘连。
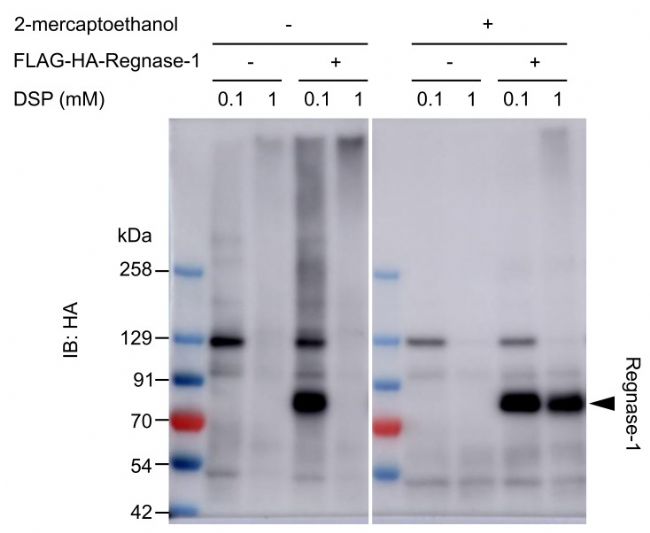
图:优化DSP浓度进行Co-IP
Bio Protoc. 2022 Aug 5;12(15):e4478.
相关产品推荐
| 货号 | 名称 | 产品类别 |
| abs44059664 | DSP | 交联剂 |
| abs828942 | BS3 | 交联剂 |
2. 使用温和裂解体系
裂解是最容易破坏弱互作的环节,强变性体系会直接击碎脆弱的蛋白结合。
| 去垢剂 | 温和程度 | 适用场景 |
| Digitonin | ★★★★★ | 膜蛋白复合体、极弱互作 |
| NP-40 (0.1–0.5%) | ★★★★ | 弱互作的首选方案 |
| CHAPS | ★★★ | 两性离子特性,对蛋白构象影响较小 |
| Triton X-100 (≤0.5%) | ★★★ | 常规选择,但对弱互作偏强 |
| 脱氧胆酸钠 | ★★ | 破坏大部分弱互作,一般不用于Co-IP |
| SDS (0.1%) | ★ | 完全破坏蛋白互作,不能用于 Co-IP |
· 降低去垢剂强度,用NP-40或Triton X-100替代RIPA,极端情况下可尝试Digitonin。
· 盐浓度从常规的150 mM NaCl降到50–100 mM。高盐会屏蔽互作界面的静电作用。
· 裂解时间缩短到5–10min,全程冰上,减少解离的时间窗口。
· 如果互作依赖磷酸化,磷酸酶抑制剂一定要加足;如果涉及泛素化底物,加MG132防止底物在裂解过程中被蛋白酶体降解。
相关产品推荐
| 货号 | 名称 | 产品类别 |
| abs9160 | NP-40裂解液 | 裂解液 |
| abs9116 | 免疫印迹及免疫沉淀用(WB/IP)裂解液 | 裂解液 |
| abs9162 | 广谱型磷酸酶抑制剂混合物 | 酶抑制剂 |
| abs9161 | 广谱型蛋白酶抑制剂混合物 | 酶抑制剂 |
| abs817874 | MG-132 | 酶抑制剂 |
3. 优化孵育和洗涤操作
在控制背景前提下,尽可能保住脆弱复合体。
· 低温低速孵育:全程4℃垂直旋转孵育,避免室温孵育导致蛋白构象变化与复合体解离;可适当延长孵育时间提升富集效率,但不宜超过12 h,避免非特异吸附同步升高。
· 减少洗涤次数,降低洗涤强度:强互作通常洗涤3-5次,弱互作可酌情减少至2-3次;洗涤液沿用与裂解液一致的去垢剂浓度,不要额外提高去垢剂强度。
· 操作轻柔:洗涤过程避免剧烈吹打、高速震荡,防止机械力破坏弱结合的蛋白复合体。
4. 从生物学角度放大信号
有时候互作确实发生了,但信号太弱,可从样本本身提高互作复合体的丰度或者优化检测方法。
· 诱导激活通路:针对信号通路相关互作,先通过配体、药物刺激细胞,激活通路后再收样,大幅提升功能性互作的比例,比盲目优化实验体系效率更高。
· 增加Input量:从常规的0.5–1 mg总蛋白提升到2–3 mg(前提是beads没饱和)。
· 换检测方法:如果WB信号太弱,换更灵敏的化学发光液;或者直接对IP产物跑银染或质谱,绕过抗体检测的二次损耗。
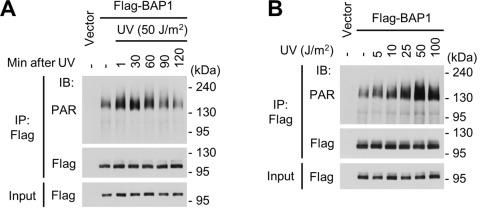
图:UV刺激后BAP1-PARP1互作增强
Cell Death Differ. 2022 Dec;29(12):2381-2398.
相关产品推荐
| 货号 | 名称 | 产品类别 |
| abs810030 | Rapamycin | 小分子化合物 |
| abs810020 | Paclitaxel | 小分子化合物 |
| abs810040 | FK-506 | 小分子化合物 |
| RPN2235 | ECL Select WB Detection Reagent | 显色液 |
| abs9434 | 超敏型ECL化学发光检测试剂盒 | 显色液 |
| abs9435 | 极敏型ECL化学发光检测试剂盒 | 显色液 |
5. 优化互作检测方法
有些互作天生就不适合Co-IP,死磕下去是浪费时间。以下替代方案值得了解:
| 技术 | 适合什么场景 | 核心优势 |
| PLA | 原位验证 | 在固定细胞里检测,不经过裂解步骤 |
| FRET / BiFC | 活细胞动态互作 | 保留天然环境,能实时观察结合与解离 |
| Y2H | 筛选新的互作蛋白、验证二元直接互作 | 酵母体内环境,报告基因可放大弱信号 |
| GST-Pull Down | 体外验证直接互作、做结构域缺失mapping | 背景干净,原核表达成本低,可控性强 |
| BLI | 亲和力定量、结合动力学分析 | 无流路设计,样品可回收,操作门槛低于SPR |
| SPR(Biacore) | 亲和力精确测定(金标准) | 无标记、实时动力学、灵敏度最高 |
相关产品推荐
| 货号 | 名称 | 产品类别 |
| 60025 | NaveniFlex Cell MR RED | PLA试剂盒 |
| 60026 | NaveniFlex Tissue MR Atto647N | PLA试剂盒 |
| abs50082 | GST Pull Down Kit | Pull Down试剂盒 |
| RPN2235 | ECL Select WB Detection Reagent | 显色液 |
| BR100530 | Series S Sensor Chip CM5 | Biacore芯片 |
| BR100050 | Amine Coupling Kit | Biacore氨基偶联试剂盒 |
| 28995056 | His Capture Kit | Biacore试剂盒 |
最后需要明确的是,弱互作的优化永远有边界——不能为了得到一条亮带,无限放宽洗涤、提高蛋白量,最终把背景噪音当成真实信号。
蛋白互作的强弱,是其生物学功能决定的天然属性,没有高下之分。不必执着于“跑出粗壮亮带”才叫实验成功,只要体系严谨、对照完善、多技术交叉验证形成证据链,微弱但稳定的互作信号,同样是扎实可信的科研数据。