脑-脊髓痛觉脑轴介导阿片抵抗机械痛新机制的研究
2026-09-18 来源:本站 点击次数:25
2026年9月3日,《Neuron》刊发了南方科技大学生命科学学院程龙珍团队的研究论文“A descending glycinergic circuit drives opioidresistant mechanical pain via spinal GluN3A excitatory glycine receptors in mice”。该研究以小鼠为研究对象,构建颅面痛诱发后爪痛敏动物模型,综合运用病毒环路操控、在体行为学、组织分子检测与电生理记录等多维度技术手段,揭示了一条由延髓头端腹内侧区 GlyT2 阳性神经元投射至脊髓背角 SOM 阳性神经元的脑 - 脊髓下行甘氨酸能环路;打破脊髓甘氨酸仅作为抑制性递质的传统认知,证实脊髓背角 SOM 阳性神经元上存在功能性 GluN3A 兴奋性甘氨酸受体。来自脑干下行通路释放的甘氨酸可激活该受体,介导颅面痛诱发的全身性吗啡抵抗机械异常痛,该信号轴可在多层面绕过阿片受体的调控作用。该研究解析了阿片抵抗性机械痛全新病理机制,完善了脑干 - 脊髓下行痛觉调控理论,同时提出 GluN3A - NMDAR 可作为难治性疼痛的潜在非阿片镇痛靶点,为偏头痛、三叉神经痛等临床难治疼痛的后续基础研究与药物开发提供重要理论支撑。
01研究方法
1.1 动物模型
构建 CFH 颅面痛 - 后爪异常痛小鼠模型,向小鼠面部胡须垫注射致痛物质,模拟临床颅面痛,诱导后爪出现吗啡抵抗的机械异常痛。使用多种基因工具小鼠,实现特定神经元的标记、条件性基因敲除。
1.2 病毒工具操控神经环路
借助多种 AAV 病毒、狂犬病毒、HSV 疱疹病毒,实现神经元特异性消融、化学遗传激活/抑制、跨单突触示踪、顺行跨突触示踪、环路特异性基因敲低,精准操控脑 - 脊髓之间特定的投射环路,区分不同亚群神经元的功能。
1.3 行为学检测
采用 von - Frey 丝、毛刷刺激,分别检测点状、动态机械异常痛;使用条件性位置厌恶(CPA)范式,评估疼痛带来的主观负性情绪感受;给予吗啡处理,用来判断疼痛表型的阿片抵抗特性。
1.4 组织学与分子检测
利用 c - Fos 染色标记被激活的神经元;RNAscope 原位杂交检测多种基因 mRNA 的共表达;免疫荧光完成细胞分型与定位分析;挖掘公开人类脊髓单核转录组数据集,观察目标基因在人脊髓中的表达模式。
1.5 电生理记录
制备脊髓、脑干脑片,开展全细胞膜片钳记录。分别记录 RVM 神经元兴奋性变化、脊髓背角 SOM 阳性神经元的受体电生理响应;使用带背根的脊髓切片,观察低阈值触觉纤维介导的脊髓门控通路开放状态。
1.6 统计分析
依据数据特征选用对应的统计学检验方法,评判各组之间的差异显著性。
02研究内容
2.1 CFH 模型确立颅面痛驱动自上而下的吗啡抵抗痛
研究人员构建 CFH 小鼠模型,向小鼠面部给予伤害性化学刺激。结果发现,仅面部局部致痛刺激,就能够诱导小鼠双侧后爪产生机械性异常痛。即便给予系统吗啡处理,后爪的异常痛表型依旧存在,复现临床“颅面痛诱发远隔躯体阿片抵抗痛”现象。
不仅仅观察动物缩爪的反射行为,条件性位置厌恶实验证实,轻柔触觉刺激可以使小鼠产生明显的厌恶情绪,说明该模型下触觉刺激确实带来主观层面的痛苦感受。
进一步电生理与 c - Fos 染色结果提示,颅面痛会打开脊髓背角原本处于关闭状态的吗啡抵抗痛通路。在吗啡给药的前提下,毛刷刺激依旧可以大量激活脊髓背角神经元。这一现象不是后肢外周损伤导致,而是大脑向下传递信号,改变脊髓感觉信号处理,也就是文章提出的 “自上而下效应”。
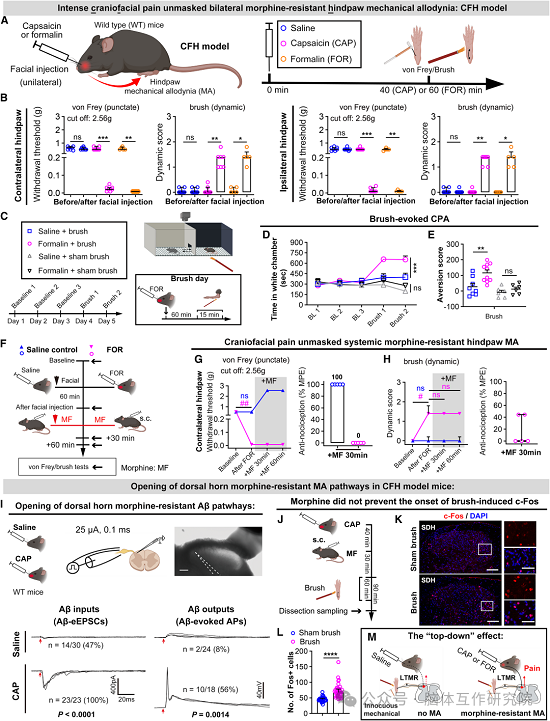
图 1 为 CFH 模型的整套实验结果。
2.2 颅面痛使 RVM 向脊髓投射的 GlyT2 + 神经元兴奋性升高
C - Fos 染色显示,发生颅面痛之后,RVM 区域大量神经元被激活,其中相当一部分是 GlyT2 阳性甘氨酸能神经元。逆向荧光标记实验证明,RVM 内部有一部分 GlyT2 阳性神经元存在向脊髓背角的轴突投射。脑片电生理记录证实,CFH 模型中,这一类投射向脊髓的 GlyT2 + 神经元自发动作电位发放频率上升,神经元整体兴奋性显著增强。
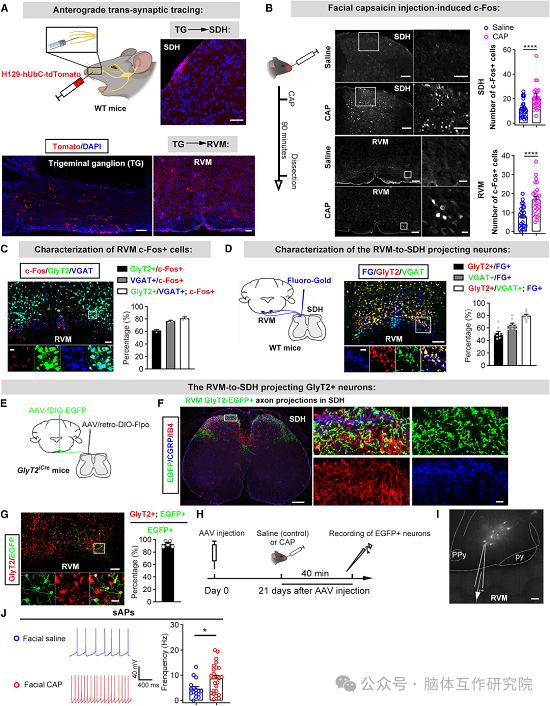
图 2 探究 CFH 模型中 RVM 投射到 SDH 的 GlyT2 + 神经元的激活状态。
利用逆向跨单突触病毒示踪,结果显示 RVM - SDH 的 GlyT2 + 神经元接收来自三叉神经节的直接输入,面部伤害信号由此传递至该群神经元。除此之外,该神经元还接收杏仁核、前扣带回、臂旁核等大量和感觉处理、应激、负性情绪相关脑区的会聚输入。这解释了疼痛、焦虑、压力等情绪因素可以协同放大该下行环路的活性。
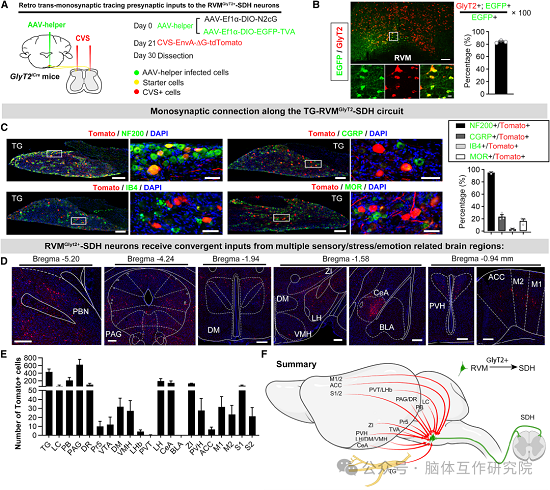
图 3 解析该群神经元的上游输入来源。
2.3 RVM - SDH GlyT2 + 神经元是自上而下效应的必要条件
通过逆向病毒介导细胞消融,特异性清除 RVM 中投射向脊髓背角的 GlyT2 + 神经元。结果显示,CFH 模型中小鼠不再出现双侧后爪的吗啡抵抗机械异常痛,反射层面和情绪厌恶层面的疼痛表型全部消失。
使用化学遗传手段,特异性抑制 RVM - SDH GlyT2 + 神经元的脊髓轴突末梢,同样可以完全消除 CFH 模型诱导的异常痛。作为对照,抑制 RVM - SDH 的 GlyT2 阴性神经元不会阻断颅面痛诱发的远隔异常痛。
该组实验同时区分两类神经元的生理分工:RVM - SDH GlyT2 阴性神经元主要调控伤害性机械刺激的痛阈值;而 GlyT2 阳性神经元,专门介导无害触觉诱发的机械异常痛。二者功能相互独立。
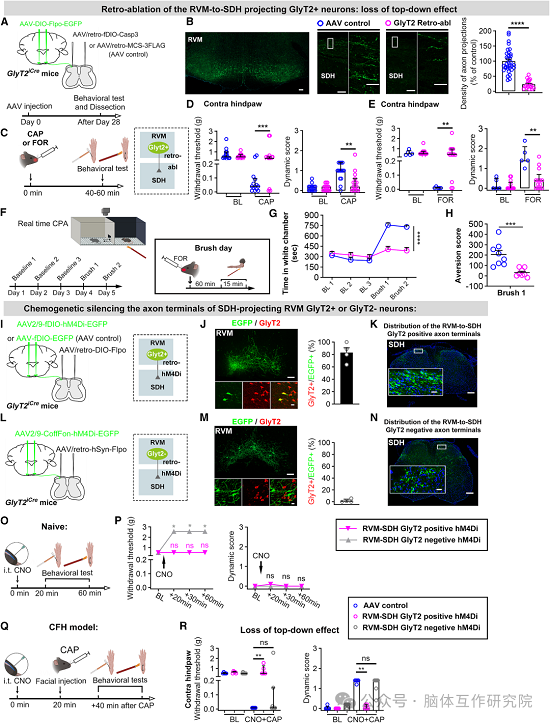
图 4 开展一系列功能缺失实验,验证 RVM - SDH GlyT2 + 神经元的必要性。
2.4 激活 RVM - SDH GlyT2 + 神经元足以复刻吗啡抵抗异常痛
在正常健康小鼠体内,不给予任何面部致痛刺激,通过化学遗传选择性激活 RVM - SDH GlyT2 + 神经元的轴突末梢。结果小鼠直接出现点状与动态的机械异常痛;即便注射吗啡,该异常痛依旧存在,完整复刻 CFH 模型的核心表型。
c - Fos 染色结果显示,仅仅激活该下行环路,脊髓背角就会出现大量神经元激活;吗啡无法抑制这种脊髓神经元的激活。与之对照,激活 RVM - SDH GlyT2 阴性神经元,并不能够诱发机械异常痛。至此,研究完成该环路必要性与充分性的完整因果论证。
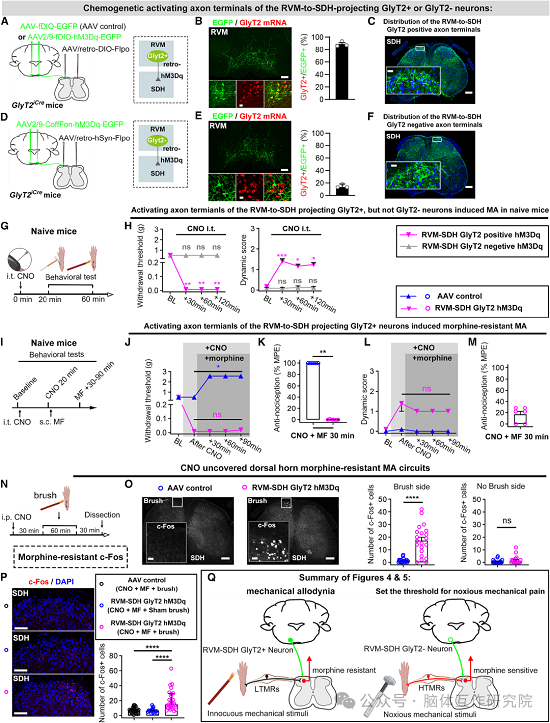
图 5 开展功能获得实验,验证环路的充分性
2.5 SDH 的 SOM + 神经元表达功能性 GluN3A 兴奋性甘氨酸受体
RNAscope 原位杂交结果表明,小鼠脊髓背角绝大部分 SOM 阳性兴奋性神经元共表达 GluN3A;公共人类脊髓转录组数据分析提示,人类脊髓也存在同类基因共表达的现象。
开展脊髓薄片膜片钳记录,在阻断经典抑制性甘氨酸受体的条件下,外源性施加甘氨酸,可以诱发 SOM 阳性神经元强烈的兴奋内向电流。当在 SOM 阳性神经元上条件性敲除 GluN3A 基因之后,甘氨酸诱发的兴奋电流完全消失,直接证明脊髓背角 SOM 阳性神经元拥有功能性 GluN3A 兴奋性甘氨酸受体。
行为学层面,化学遗传直接激活 SDH 的 SOM 阳性神经元,健康小鼠即可表现出吗啡抵抗的机械异常痛。
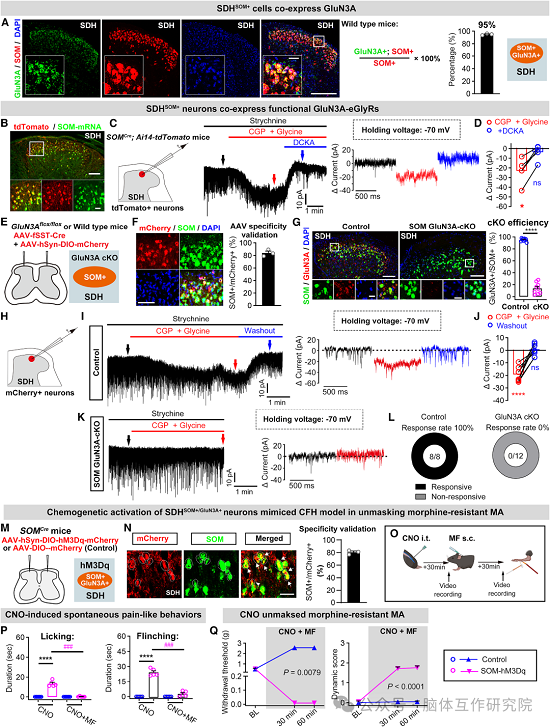
图6 聚焦脊髓侧下游靶细胞与分子受体。
2.6 SDH 的 SOM + 神经元介导自上而下的阿片抵抗痛效应
C - Fos 染色证实,CFH 颅面痛模型中,脊髓背角 SOM 阳性神经元被显著激活。
化学遗传抑制 SDH 的 SOM 阳性神经元分为两组操作:一组在面部致痛刺激之前抑制神经元,可以直接阻止异常痛的发生;另一组是异常痛已经建立之后再抑制神经元,可以逆转已经产生的机械异常痛。以上结果证明 SDH 的 SOM 阳性神经元,是实现自上而下疼痛效应不可或缺的下游执行细胞。
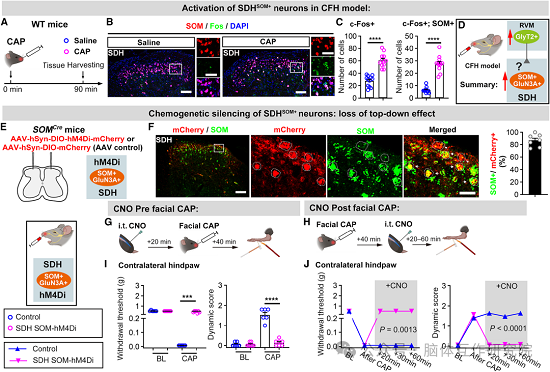
图 7 验证 SDH 的 SOM 阳性神经元在体内病理模型中的功能。
2.7 完整通路组装,验证甘氨酸 GluN3A 信号轴的核心作用
逆向跨单突触示踪证实,上游 RVM GlyT2 阳性神经元与 SDH 的 SOM 阳性神经元存在直接单突触连接。
环路特异性敲低 RVM - SDH 投射神经元的 GlyT2,减少下行轴突的甘氨酸释放。即便存在颅面部伤害刺激,小鼠也不会产生远隔部位的吗啡抵抗异常痛,脊髓背角 SOM 阳性神经元的激活水平同步下降。实验排除了脊髓局部甘氨酸能神经元作为甘氨酸的来源。
当特异性在 SDH 的 SOM 阳性神经元敲除 GluN3A 受体,颅面痛也无法诱导自上而下的机械异常痛。如果在脊髓其他抑制性神经元敲除 GluN3A,则不会改变疼痛表型。综合全部实验,确立完整信号通路:颅面痛激活 RVM - SDH GlyT2 + 下行神经元,释放甘氨酸,激活 SDH SOM + 神经元表面 GluN3A 兴奋性甘氨酸受体,最终产生吗啡抵抗的机械异常痛。
文章在讨论部分分析该通路产生阿片抵抗的原因:GluN3A 兴奋性甘氨酸受体本身不受 μ 阿片受体调控;同时吗啡难以有效抑制上游 RVM GlyT2 阳性神经元的活动,在多个层级绕开阿片的镇痛调控。同时客观阐述本研究的局限:缺少直接检测活体突触甘氨酸释放的探针;切片上光遗传难以记录该突触的电生理信号;人类样本仅来自转录组公共数据集,还需要更多临床样本验证;GlyT2 + 神经元共释放 GABA 的功能还有待后续解析。
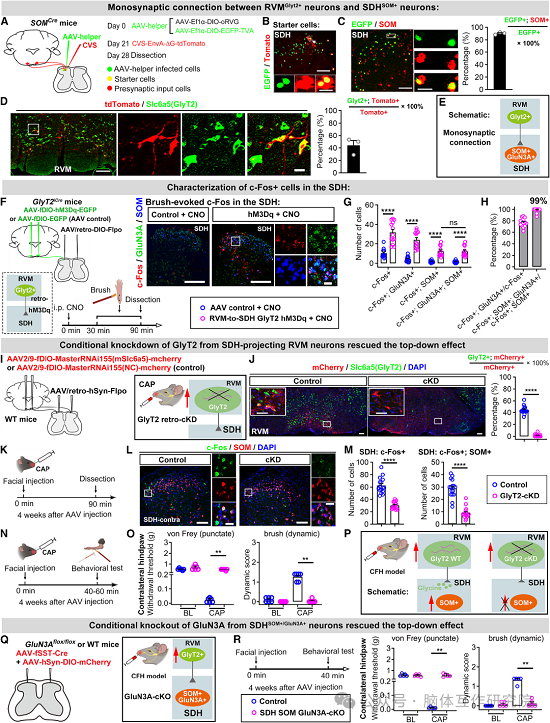
图 8 完成完整通路链条的组装与最终验证。
03 创新点
3.1 概念创新,更新脊髓甘氨酸递质的功能认知
过去普遍认为,脊髓当中甘氨酸只发挥抑制神经元活动的作用。该文章借助电生理、条件性基因敲除等证据,首次在脊髓背角证实功能性 GluN3A 依赖性兴奋性甘氨酸受体的存在。脑干下行通路释放的甘氨酸,不再抑制下游细胞,反而会兴奋脊髓背角神经元,驱动病理疼痛,刷新对脊髓甘氨酸信号的理解。
3.2 环路创新,鉴定全新介导阿片抵抗痛的脑脊髓下行通路
本研究鉴定出 RVMGlyT2+ → SDHSOM+/GluN3A+ 这一条特异性下行疼痛易化环路,解释了临床颅面痛伴随全身远隔痛敏的病理机制。同时区分 RVM 内部两类投射神经元的功能分工:GlyT2 + 神经元负责无害触觉带来的异常痛;GlyT2 - 神经元主要调控伤害性刺激痛觉阈值。该结论跳出传统 RVM 的 ON - cell/OFF - cell 二元分类框架,完善脑干下行痛调控理论。
3.3 机制创新,解析阿片抵抗疼痛的分子细胞学基础
揭示该病理疼痛能够多层级绕开 μ 阿片受体调制的内在机制,解释临床上一部分疼痛对于吗啡治疗不敏感的细胞分子原因。
3.4 转化创新,提供非阿片镇痛全新潜在靶点
将 GluN3A - NMDA 受体确立为难治性阿片抵抗痛的潜在干预靶点。为偏头痛、三叉神经痛、纤维肌痛等伴随广泛触觉痛敏的疾病,提供非阿片类药物开发新方向。
04启发
4.1 基础科研层面启发
要破除神经递质功能固化的固有思维。同一种神经递质最终产生兴奋还是抑制效应,并不由递质本身决定,而是由靶细胞所表达的受体类型决定,甘氨酸在脊髓既可以抑制,也可以介导兴奋。
研究脑干下行疼痛调控,不能简单将核团当作均质整体。必须基于分子标记区分神经元亚群,否则不同细胞的功能会互相掩盖,难以找到真正的疾病相关环路。
神经环路因果关系的确立,需要同时完成必要性和充分性两套实验证据。仅仅观察到神经元在疾病模型中激活,只能得到相关性;需要细胞特异性的抑制、激活操控,才能建立因果。多种技术互相交叉印证,表型 - 环路 - 细胞 - 分子链条完整,假说才足够坚实。
4.2 临床转化层面启发
很多慢性疼痛并非单纯由外周组织损伤驱动,大脑下行环路的病理性激活,会在脊髓层面造成中枢敏化,这也是阿片药物失效的重要诱因。仅仅依靠阿片类镇痛药物,无法针对该中枢环路,治疗效果有限。临床面对颅面痛合并广泛躯体痛敏的患者,需要考虑脑 - 脊髓下行环路的病理参与。开发新型镇痛药物,可以瞄准中枢脊髓靶点,推动非阿片镇痛药物研发,缓解阿片滥用的现实压力。
4.3 科研思维与实验设计启发
本研究从真实临床观察出发,由临床现象反向构建动物模型,自临床问题导入基础机制解析,实现临床现象驱动基础研究。同时文章坦诚交代现有技术带来的研究局限,区分间接推论与直接实验证据,客观指出尚未解决的科学问题,为后续研究指明方向。
参考文献:
Dong D, HUO J T, YIN G J, et al. A descending glycinergic circuit drives opioid‑resistant mechanical pain via spinal GluN3A excitatory glycine receptors in mice[J]. Neuron, 2027, 115. DOI:10.1016/j.neuron.2026.08.003.
作者介绍:
程龙珍,博士,现任南方科技大学生命科学学院长聘副教授、博士生导师。
研究领域:
- 慢性疼痛和慢性瘙痒的中枢神经环路及其调控机制;
- 阿片类药物引起疼痛敏化的神经环路机制研究;
- 躯体感觉的脊髓神经环路及其调控机制研究。
-END-
想了解更多内容,获取相关咨询请联系
电 话:+86-0731-84428665
伍经理:+86-180 7516 6076
工程师:+86-180 7311 8029
邮 箱:consentcs@163.com